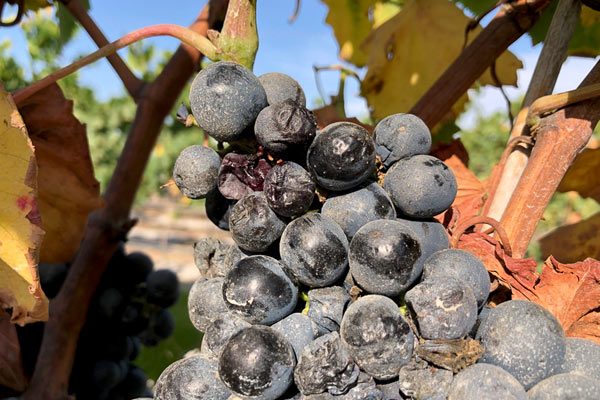
斑翅果蝇(Matsumura, 1931)是一种经济重要性日益增长的害虫,危害大量果树品种、浆果作物和葡萄。
该物种最初于1980年在夏威夷群岛被描述(Kaneshiro, 1983)。2008年在西班牙和美国加利福尼亚州被报道,2009年在意大利被报道(Cini et al., 2012)。从那时起,斑翅果蝇迅速扩散,在十年内已成为欧洲和北美大部分地区软皮水果的主要害虫(EPPO, 2025)。其在各地区的mass繁殖对水果生产产生负面影响,常常导致损失达到完全毁坏收成的程度。
斑翅果蝇是一种具有广泛生态可塑性的物种,因此它能成功适应气候条件——从温带大陆性到地中海甚至高海拔地带。斑翅果蝇的寄主范围极其广泛——超过90种栽培和野生植物,但它偏好外果皮薄的水果,对果实造成严重损害,破坏果肉并允许次生微生物侵入导致腐烂过程(Tundagi et al., 2023)。这显著增加了大规模扩散的风险,给种群限制带来困难。气候因素对斑翅果蝇的发育和繁殖有显著影响。
温度条件,尤其是冬季温度,对成虫的存活起决定性作用(Leach et al., 2019)。同时,生长季的温度值决定幼虫发育和单一季节内的世代数(Wang et al., 2016)。在30°C以上的温度下,观察到种群显著减少和对葡萄园攻击风险降低(Eben et al., 2018),这表明气候变化对不同地区该物种的扩散可能既有抑制作用也有促进作用。
斑翅果蝇的生物学特征使其与果蝇属的大多数代表种不同。与偏好过熟或已受损水果的普通果蝇(黑腹果蝇)不同,斑翅果蝇在完全健康的水果中产卵(Kienzle et al., 2020)。葡萄的品种选择和品种特性也影响受害程度。研究表明,与白葡萄品种相比,红葡萄酒品种更受斑翅果蝇偏好(Weissinger et al., 2021)。
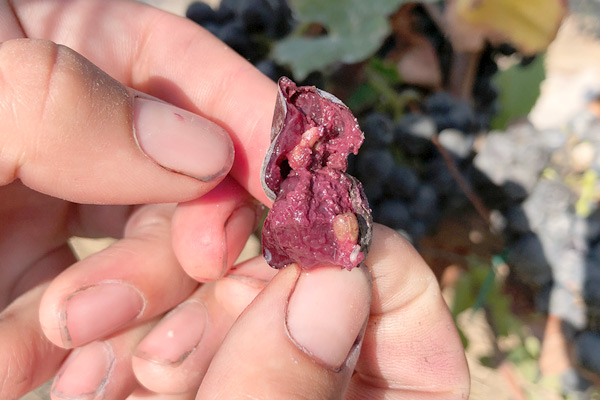
该物种对红色水果的偏好已被多位学者证实,他们发现红紫色果皮品种的受害程度高于黄绿色品种(Poyet et al., 2015)。除颜色外,果穗紧密度和裂果倾向等形态特征也是增加受害风险的关键因素(Hartman and Kaiser, 2008)。
斑翅果蝇以成虫越冬,偏好森林中的阴凉处。当平均日温度升至10°C以上时,该物种开始活动。果蝇在20–25°C之间最为活跃,在30°C时其活动减少(Kanzawa, 1939)。在适宜条件下可全年发育,但已确定在5°C以下果蝇进入冬季滞育(EPPO, 2010)。
根据地区的气候条件,该物种每年发育7至15代。该物种的发育经历完全变态——卵、幼虫(3个幼虫龄期)、蛹和成虫。最初,雌性性未成熟,为成熟需要补充营养,在1-2天内达到性成熟。在取食过程中,它们测定水果中的糖含量,约14%的糖含量是它们在适宜环境中产卵所必需的。
在酸性水果中,幼虫无法完成发育。雌性用其锯齿状产卵器在果实内部产卵。在秋季低温下,性成熟雌性停止产卵,并在次年春季继续。
为确定该物种在保加利亚境内的生物学特性,开发了CLIMEX模型,借助该模型创建了斑翅果蝇的生态气候指数(EI)图和潜在世代数图。
这些指数使得能够识别气候条件有利于害虫发育和越冬的地区。某一地区的生态气候指数越高,条件对该物种的发育越有利。当值为10时,假定该物种可以越冬。保加利亚西北部和中部部分地区的EI值表明,该国的气候条件适合该物种的发育。
此外,即使在斑翅果蝇越冬条件不利的地方,也不排除出现可能造成重大损害的临时种群(Karadjova et al., 2015)。气候模型结果分析表明,斑翅果蝇可在该国扩散并每年发育3至7代。有些地区该物种可以永久定殖并越冬(Karadjova et al., 2015)。
研究于2025年在保加利亚南部三个地区的田间条件下进行:
- 普罗夫迪夫州Brestovitsa村,品种为„Velika"
- 旧扎戈拉州Granit村,品种为:„Afrodita"和„Viktoria"
- 斯利文州Kovachite村,品种为:„Muscat Ottonel"、„Hamburg Muscat"和„Alphonse Lavallée"。
葡萄藤嫁接在Berlandieri × Riparia SO4砧木上,处于盛果期,以中干形Stem Guyot整形方式栽培,修剪为混合修剪。
斑翅果蝇的监测
通过放置在葡萄园农业生态系统中的食物诱捕器和信息素诱捕器监测斑翅果蝇的发生和种群动态。
食物诱捕器
为监测斑翅果蝇,使用含有红葡萄酒和苹果醋按2:1比例混合的食物诱捕器,放置在塑料容器中。
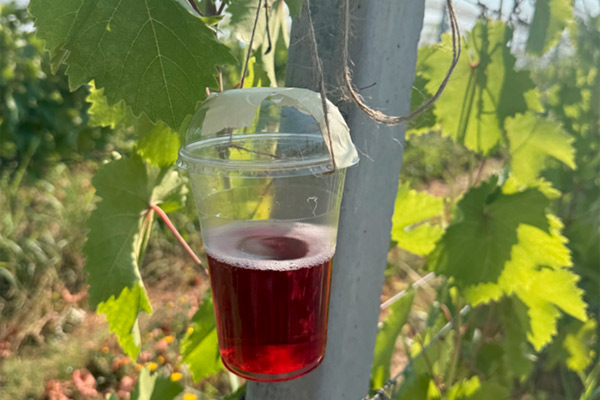
图1:用于监测斑翅果蝇的食物诱捕器
诱捕器放置在葡萄植株果穗周围。每10天检查一次诱捕器,每次检查时将食物诱饵更换为新配制的混合物。
信息素诱捕器
为监测斑翅果蝇,使用了PHEROCON® SWD PEEL-PAK™ Broad Spectrum信息素诱捕器,配合PHEROCON® Red Sticky Canopy Trap和PHEROCON® SWD Dual Panel Sticky Liner,由Trécé公司提供。诱捕器放置在果穗区,即观察到成虫活动最高的区域,以提高捕获效率。必要时,按照制造商的说明更换粘性底板和信息素。在0.5公顷的试验区域放置了两个信息素诱捕器。
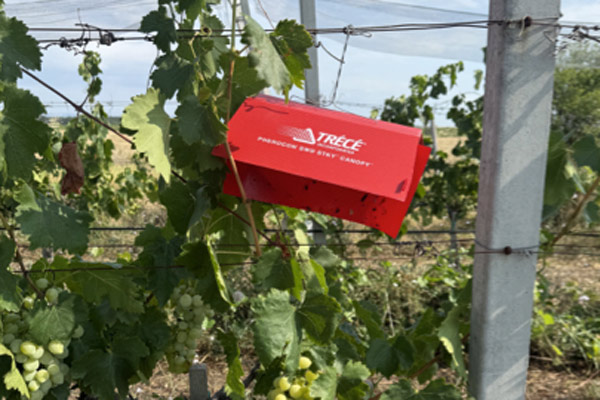
图2:用于监测斑翅果蝇的信息素诱捕器
结果表明斑翅果蝇在调查的葡萄种植区广泛分布。这一趋势表明该物种具有高适应潜力,需要在其种群监测和防治中加强关注。
捕获的斑翅果蝇成虫总数在三个研究地区之间显示出显著差异。
最高丰度记录在Brestovitsa村——共1564头。
该地区的特点是集约化葡萄种植和活跃的酿酒活动,以及附近存在废弃葡萄园。
品种„Velika"具有大果粒、薄皮和高糖含量,这些条件有利于斑翅果蝇的产卵和发育。根据Cini et al. (2012)和Asplen et al. (2015),薄皮和多汁的品种特别受该物种偏好,这可能解释了该地区害虫的高密度。
Granit村斑翅果蝇的丰度显著较低——共84头。
在Granit村观察期间,邻近作物为小麦和薰衣草,葡萄园品种为„Afrodita"和„Viktoria"。田间作物不是该物种的适宜食物寄主,且品种„Afrodita"和„Viktoria"具有较密的果皮和较好的抗裂性,限制了产卵的可能性。Lee et al. (2011)报道了类似结果,他们指出缺乏适宜寄主导致害虫种群密度显著降低。
Kovachite村记录的斑翅果蝇丰度为145头。该地区附近种植了香菜和其他田间作物,品种为„Muscat Ottonel"、„Hamburg Muscat"和„Alphonse Lavallée"。这些品种,尤其是„Alphonse Lavallée",具有较大和多汁的果粒,使其可能适合该害虫的发育。存在易感品种的葡萄园可能决定了与Granit村相比更高的丰度,但与Brestovitsa村相比更低。Ioriatti et al. (2018)也建立了品种组成与斑翅果蝇密度之间的类似关系,他们强调了农业生态条件和品种特性的重要性。所获得的结果证实,斑翅果蝇的分布和密度与适宜寄主的存在以及葡萄园的品种特性密切相关,薄皮和高糖含量的品种为害虫的发育创造了更有利的条件。
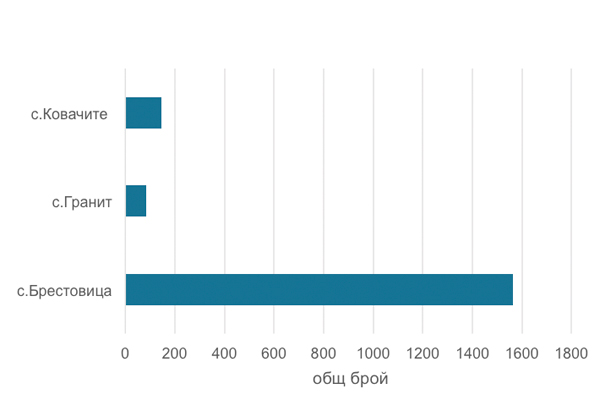
图3:2025年Brestovitsa村、Granit村和Kovachite村葡萄园中捕获的斑翅果蝇成虫总数。
监测是斑翅果蝇综合治理的关键要素,对限制其密度具有至关重要的意义。通过使用食物和信息素诱捕器定期跟踪成虫丰度,可获得关于害虫发生和动态的信息。这使得能够确定采取防治措施的最佳时间并减少种植园的损失。
参考文献
1. Karadjova, O., Draganova, S., Tomov, R., Ilieva, Zh., Laginova, M., Ivanova, I., Prodanova, S., Rosnev, N., & Chavdarov, L. (2015). National Programme for Phytosanitary Control and Control of Drosophila suzukii.
2. Cini, A., Ioriatti, C., & Anfora, G. (2012). A review of the invasion of Drosophila suzukii in Europe and a draft research agenda for integrated pest management. Bulletin of Insectology, 65(1), 149–160.
3. Eben, A., Espinosa, P. J., Sevilla, F., & Dalmau, E. (2018). Seasonal variation and preference of Drosophila suzukii (Diptera: Drosophilidae) in Spanish vineyards. Journal of Applied Entomology, 142(7), 644–654.
4. EPPO (2010a). Pest alert: Drosophila suzukii. Paris: European and Mediterranean Plant Protection Organization.
5. EPPO (2025). EPPO Global Database: Drosophila suzukii. Paris, France: European and Mediterranean Plant Protection Organization.
6. Hartman, C., & Kaiser, C. (2008). Impact of grape variety characteristics on fruit susceptibility to Drosophila suzukii. Viticulture Science Journal, 6(2), 201–207.
7. Kaneshiro, K. Y. (1983). Drosophila (Sophophora) suzukii (Matsumura) on Oahu. Proceedings of the Hawaiian Entomological Society, 24, 179.
8. Kanzawa, T. (1939). Studies on Drosophila suzukii Matsumura. Yamanashi Agricultural Experiment Station, 49 pp.
9. Kienzle, R., Groß, L. B., Caughman, S., & Rohlfs, M. (2020). Resource use by individual Drosophila suzukii reveals a flexible preference for oviposition into healthy fruits. Scientific Reports, 10, 3132.
10. Leach, H., Moses, J., Hanson, E., Fanning, P., & Isaacs, R. (2019). Rapid population growth of Drosophila suzukii in the absence of crop protection. Journal of Economic Entomology, 112(2), 886–894.
11. Poyet, M., Le Roux, V., Gibert, P., Meirland, A., Prévost, G., Eslin, P., & Chabrerie, O. (2015). The wide potential trophic niche of the invasive Drosophila suzukii: The key of its success? PLoS ONE, 10(11), e0142785.
12. Riedle-Bauer, M., Wiman, N. G., & Fischer, S. (2020). Susceptibility of grape cultivars to Drosophila suzukii and implications for management. Insects, 11(9), 611.
13. Walsh, D. B., Bolda, M. P., Goodhue, R. E., Dreves, A. J., Lee, J., Bruck, D. J., Walton, V. M., O'Neal, S. D., & Zalom, F. G. (2011). Drosophila suzukii (Diptera: Drosophilidae): invasive pest of ripening soft fruit expanding its geographic range and damage potential. Journal of Integrated Pest Management, 2(1), G1–G7.
14. Wang, X. G., Stewart, T. J., Biondi, A., Chavez, B. A., Ingels, C., Caprile, J., Grant, J. A., & Daane, K. M. (2016). Population dynamics and ecology of Drosophila suzukii in temperate climates. Journal of Pest Science, 89(3), 701–712.
15. Weissinger, A., Bahlmann, L., & Vogt, H. (2021). Influence of grape variety on oviposition and infestation behavior of Drosophila suzukii. Vitis, 60(3), 129–136.